Đảo lớn có nhiều loài hơn đảo nhỏ vì đảo lớn có nhiều nơi ở hơn và quần thể đông hơn nên loài ít bị tuyệt chủng tại chỗ; đảo gần đất liền có nhiều loài hơn đảo xa vì sinh vật dễ tới hơn. Thuyết địa sinh học đảo của Robert MacArthur và Edward O. Wilson, trình bày đầy đủ trong cuốn sách năm 1967, gói hai ý đó thành một mô hình: số loài trên đảo là điểm cân bằng giữa tốc độ loài mới tới và tốc độ loài cũ biến mất. Quy tắc dễ nhớ là diện tích tăng gấp mười thì số loài thường chỉ tăng khoảng gấp đôi.
Câu hỏi của những người đi đếm loài
Từ thế kỷ 19, các nhà tự nhiên học đi khắp các quần đảo đã nhận ra một quy luật: đảo càng to càng nhiều loài chim, loài bò sát, loài cây. Nhưng mức tăng không tỷ lệ thuận. Một đảo rộng gấp mười không có số loài gấp mười.
Năm 1957, nhà côn trùng học Philip Darlington, khi tổng kết số loài bò sát và lưỡng cư trên các đảo vùng Caribe, đưa ra một quy tắc gần đúng: diện tích đảo tăng gấp mười thì số loài tăng khoảng gấp đôi. Viết bằng công thức, số loài S và diện tích A liên hệ theo dạng S = c × A^z, tức số loài bằng một hằng số nhân với diện tích luỹ thừa z, với z thường nằm trong khoảng 0,2–0,35 ở các đảo đại dương. Đây gọi là quan hệ loài – diện tích, một trong số ít "quy luật" khá ổn định của sinh thái học.
Mô hình cân bằng của MacArthur và Wilson
Đầu thập niên 1960, hai nhà sinh thái trẻ Robert MacArthur và Edward O. Wilson tự hỏi: vì sao số loài trên một đảo lại ổn định quanh một mức, dù loài cụ thể có thể thay đổi? Câu trả lời của họ, công bố trong bài báo năm 1963 rồi cuốn The Theory of Island Biogeography năm 1967, dựa trên hai quá trình ngược chiều.
- Nhập cư: khi đảo còn trống, gần như loài nào tới cũng là loài mới, tốc độ có loài mới rất cao. Khi đảo đã có nhiều loài, phần lớn kẻ tới là loài đã có sẵn, nên tốc độ thêm loài mới giảm dần.
- Tuyệt chủng tại chỗ: khi đảo có ít loài, ít loài để mất. Khi đảo đông loài, mỗi loài có quần thể nhỏ hơn, cạnh tranh nhiều hơn, nên tốc độ mất loài tăng.
Hai đường cong, một đi xuống, một đi lên, cắt nhau ở một điểm. Đó là số loài cân bằng. Ở điểm đó, loài vẫn liên tục tới và biến mất, nhưng tổng số giữ gần như không đổi. Hiện tượng loài thay nhau mà tổng số không đổi gọi là sự luân chuyển loài.
Hai biến số: to hay nhỏ, gần hay xa
| Loại đảo | Tốc độ loài mới tới | Tốc độ mất loài | Số loài cân bằng |
|---|---|---|---|
| To và gần đất liền | Cao | Thấp | Nhiều nhất |
| To nhưng xa | Thấp | Thấp | Trung bình |
| Nhỏ nhưng gần | Cao | Cao | Trung bình, luân chuyển nhanh |
| Nhỏ và xa | Thấp | Cao | Ít nhất |
Đảo to có nhiều kiểu nơi ở: núi, suối, đồng, bãi cát, nên chứa được nhiều loài với nhu cầu khác nhau. Quần thể mỗi loài lại đông, ít bị một mùa hạn hay một trận bão xoá sổ. Đảo gần đất liền nhận được nhiều "khách" hơn: chim bay qua, hạt trôi tới, thú bơi sang. Đảo vừa nhỏ vừa xa nhận ít khách, giữ khách cũng kém.
Ở Việt Nam có thể thấy xu hướng này một cách định tính. Phú Quốc lớn và nằm gần bờ có hệ động thực vật phong phú, nhiều loài giống đất liền. Bạch Long Vĩ nhỏ và nằm giữa vịnh Bắc Bộ có số loài thú, bò sát trên cạn ít hơn hẳn. Côn Đảo, xa bờ hơn Phú Quốc, có một số loài và phân loài đặc hữu riêng, dấu hiệu của sự cách ly lâu dài.
Thí nghiệm hút sạch côn trùng trên đảo đước
Lý thuyết cần thử nghiệm, nhưng ai có thể làm sạch sinh vật trên một hòn đảo? Năm 1966, Daniel Simberloff, khi đó là nghiên cứu sinh của Wilson, chọn một số đảo đước tí hon ở vùng quần đảo Florida Keys, Mỹ, mỗi đảo chỉ vài chục mét đường kính. Sau khi đếm kỹ mọi loài côn trùng, nhện trên đó, nhóm nghiên cứu trùm bạt kín từng đảo và xông khí diệt côn trùng, để lại cây đước còn sống.
Rồi họ theo dõi. Chỉ trong khoảng một năm, côn trùng và nhện từ các đảo lân cận và đất liền đã quay lại, số loài trên mỗi đảo trở về gần mức trước thí nghiệm. Đảo gần nguồn có số loài cao hơn đảo xa, đúng như dự đoán. Điều đáng chú ý hơn: thành phần loài không giống trước. Số loài hồi phục, nhưng loài nào trở về là chuyện ngẫu nhiên. Kết quả công bố năm 1969 là bằng chứng thực nghiệm đầu tiên cho mô hình cân bằng.
Địa sinh học đảo và diễn thế
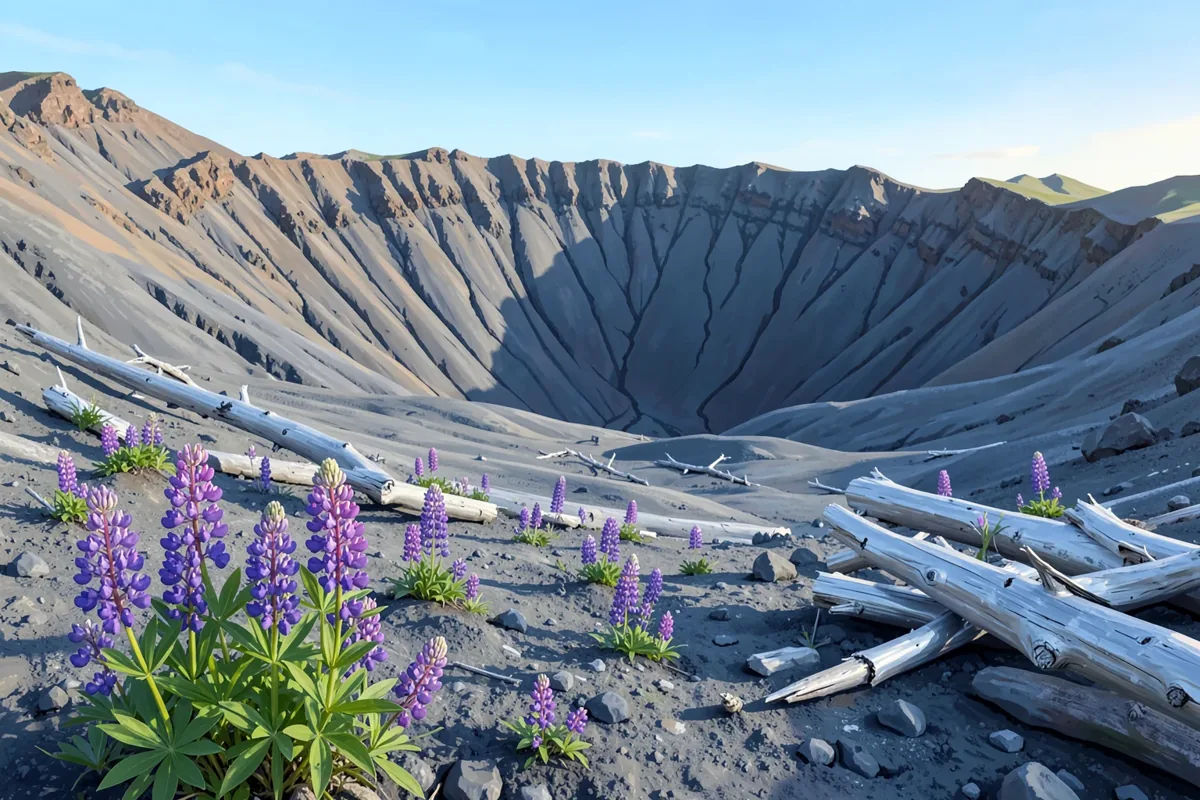
Mô hình của MacArthur và Wilson không tính tới việc đảo thay đổi theo thời gian. Nhưng trên một đảo mới, môi trường liên tục đổi: từ bãi tro trơ trụi thành đồng cỏ, rồi rừng. Mỗi giai đoạn diễn thế lại hợp với những loài khác.
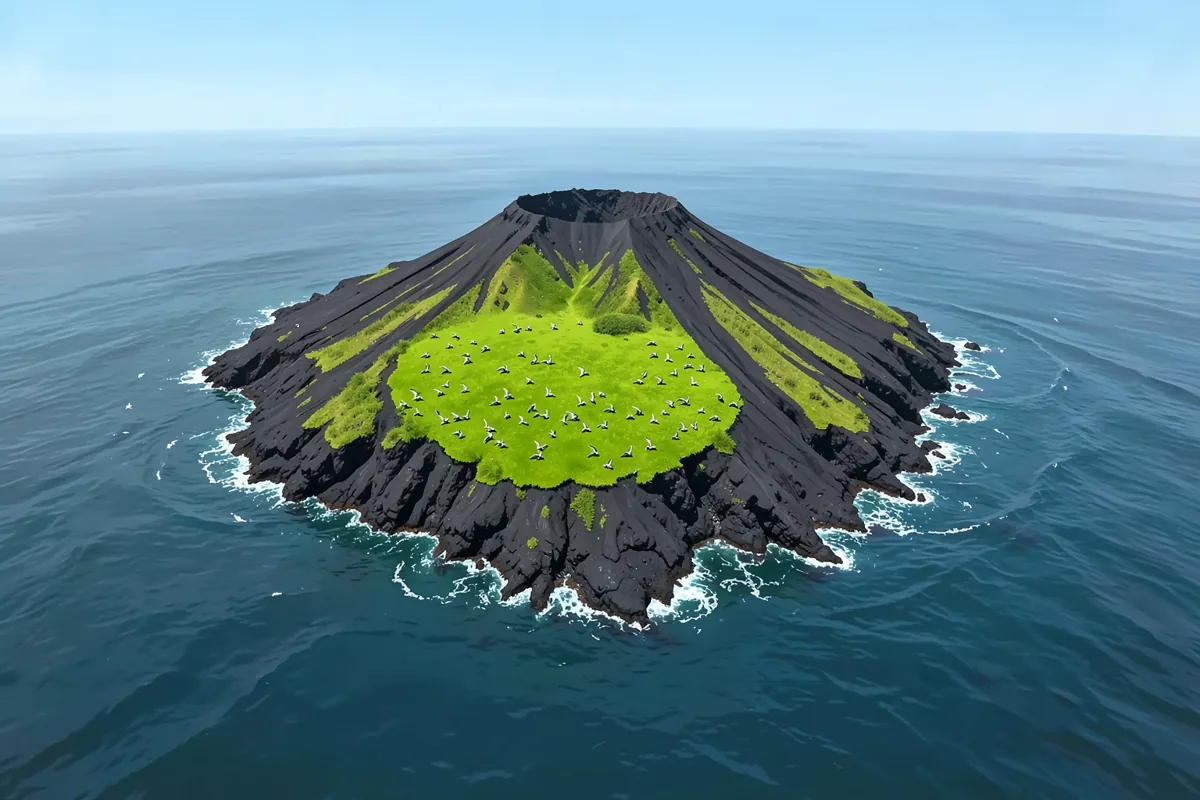
Krakatau sau năm 1883 là phép thử lớn. Các nghiên cứu của Ian Thornton, Robert Whittaker và cộng sự cho thấy số loài chim trên Rakata tăng nhanh trong vài chục năm đầu rồi chững lại, phù hợp với ý "cân bằng". Nhưng thành phần loài thay đổi mạnh khi đồng cỏ thành rừng: chim ưa trảng cỏ biến mất, chim rừng tới. Số loài thực vật thì tiếp tục tăng sau cả trăm năm. Như vậy, trên đảo trẻ, số loài phản ánh cả hai thứ: cân bằng tới – đi, và diễn thế của nơi ở. Surtsey cũng cho thấy điều tương tự: số loài cây tăng vọt chỉ khi đàn mòng biển tới làm thay đổi đất.
Đảo không chỉ có ở giữa biển
Ý tưởng mạnh nhất của thuyết địa sinh học đảo là "đảo" có thể là bất cứ nơi ở nào bị cách ly bởi một vùng không sống được: một hồ nước giữa đất liền với cá, một đỉnh núi lạnh giữa vùng đất thấp nóng với loài ưa lạnh, một khoảnh rừng còn lại giữa đồng ruộng với chim rừng.
Từ năm 1979, tại vùng Amazon gần Manaus, Brazil, một dự án nghiên cứu lâu dài đã theo dõi các mảnh rừng được giữ lại với kích thước khác nhau khi rừng xung quanh bị chuyển đổi. Kết quả ủng hộ dự đoán: mảnh càng nhỏ, càng mất loài nhanh; một số loài chim, thú lớn biến mất khỏi mảnh nhỏ chỉ sau vài năm. Việc một "đảo" mới bị cắt ra không mất loài ngay mà mất dần qua nhiều năm, cho tới khi về mức cân bằng thấp hơn, được gọi là "món nợ tuyệt chủng": cái giá phải trả muộn cho việc chia cắt hôm nay.
Đảo Barro Colorado ở Panama là ví dụ khác: nó hình thành khi người ta ngăn sông làm hồ Gatún cho kênh đào Panama, khoảng năm 1914, đồi trở thành đảo. Trong những thập kỷ sau, các nhà điểu học ghi nhận một số loài chim rừng biến mất khỏi đảo, dù rừng ở đó vẫn được bảo vệ.
Góc nhìn hôm nay: một khu to hay nhiều khu nhỏ
Thập niên 1970, thuyết địa sinh học đảo khơi lên một cuộc tranh luận lớn trong giới bảo tồn: với cùng một diện tích, nên giữ một khu lớn hay nhiều khu nhỏ? Một khu lớn giữ được loài cần nhiều không gian, nhưng nhiều khu nhỏ có thể chứa nhiều kiểu nơi ở khác nhau và không bị một thảm hoạ quét sạch cùng lúc. Câu trả lời ngày nay là "tuỳ trường hợp", và cuộc tranh luận này đã giúp sinh thái học bảo tồn trưởng thành.
Một quan sát thú vị có thể tự làm: so số loài chim thấy được ở một công viên lớn và một vườn hoa nhỏ trong cùng thành phố, hay số loài cây trên một hòn đảo lớn và một hòn đảo nhỏ khi đi du lịch vùng biển. Cuốn sách năm 1967 của MacArthur và Wilson vẫn được tái bản; bản dễ đọc hơn cho người không chuyên là cuốn The Song of the Dodo của David Quammen, kể lại lịch sử ý tưởng này qua các chuyến đi thực địa.
Câu hỏi thường gặp
Địa sinh học đảo là gì?
Địa sinh học đảo là ngành nghiên cứu vì sao các đảo có số loài như vậy và loài nào sống ở đó. Thuyết nổi tiếng nhất là mô hình cân bằng của MacArthur và Wilson năm 1967, cho rằng số loài trên đảo là cân bằng giữa tốc độ loài mới tới và tốc độ loài cũ biến mất.
Vì sao đảo lớn có nhiều loài hơn đảo nhỏ?
Đảo lớn có nhiều kiểu nơi ở nên chứa được nhiều loài với nhu cầu khác nhau. Quần thể của mỗi loài cũng đông hơn nên ít bị tuyệt chủng tại chỗ do thiên tai hay biến động ngẫu nhiên.
Quan hệ loài – diện tích là gì?
Đó là quy luật số loài tăng theo diện tích nhưng chậm hơn diện tích. Quy tắc gần đúng của Darlington là diện tích tăng gấp mười thì số loài tăng khoảng gấp đôi.
Thí nghiệm của Simberloff và Wilson là gì?
Năm 1966, họ trùm bạt và xông khí diệt côn trùng trên một số đảo đước nhỏ ở Florida Keys, rồi theo dõi côn trùng và nhện quay lại. Trong khoảng một năm số loài trở về gần mức cũ, đảo gần có nhiều loài hơn đảo xa, nhưng thành phần loài đã khác.
Thuyết địa sinh học đảo áp dụng cho đất liền thế nào?
Bất kỳ nơi ở bị cách ly nào cũng giống một hòn đảo: hồ nước, đỉnh núi, mảnh rừng còn sót giữa đồng ruộng. Các mảnh nhỏ, cô lập thường mất loài dần theo thời gian, đây là lý do sinh thái học bảo tồn quan tâm tới kích thước và sự kết nối của các khu bảo vệ.